
Nella prima parte di questo post abbiamo approfondito la definizione generale degli acidi grassi e la loro struttura chimica, individuando quelli che possiamo trovare nella birra.
In questa seconda parte esaminiamo gli acidi grassi in base agli ingredienti della birra e il loro destino durante la produzione e l’invecchiamento.
Per leggere questo articolo è importante aver letto la prima parte, altrimenti alcuni concetti e notazioni potrebbero risultare difficili da interpretare. Come sempre, questi approfondimenti semplificano una chimica molto complessa di cui ho comunque cercato di mantenere solide le basi. L’obiettivo di questa serie di post non è descrivere ogni singolo passaggio e reazione chimica, ma comprendere quali processi determinano ciò che percepiamo quando assaggiamo la birra.
Acidi grassi provenienti dal malto
Il profilo degli acidi grassi nel chicco d’orzo è dominato dall’acido linoleico (C18:2), seguito da percentuali più basse di acido palmitico (C16:0) e di acido oleico (C18:1), con quantità ancora minori di acido linolenico (C18:3).
Si tratta di acidi grassi a catena lunga (Long Chain Fatty Acids, LCFA), tutti insaturi a eccezione dell’acido palmitico, che non presenta doppi legami tra gli atomi di carbonio.
Nei malti, gli acidi grassi si trovano soprattutto sotto forma di trigliceridi, ovvero tre acidi grassi legati a una molecola di glicerolo, in una struttura che funge da riserva di energia. I trigliceridi sono una delle diverse categorie di lipidi esistenti in natura.
Durante la maltazione del cereale si attivano le lipasi, enzimi che idrolizzano i trigliceridi contenuti nel chicco, liberando gli acidi grassi contenuti al loro interno (tre per ogni trigliceride). Una parte di questi acidi viene consumata dall’embrione durante la germinazione, ma la maggioranza resta nel malto. Nel corso dell’ammostamento, una parte dei lipidi può essere ulteriormente idrolizzata, liberando acidi grassi nel mosto.
La maggior parte degli acidi grassi viene trattenuta nelle trebbie dopo l’ammostamento e nel trub dopo la bollitura. La quota che arriva nel fermentatore viene in buona parte assorbita e utilizzata dal lievito, che la incorpora nelle proprie membrane cellulari (come vedremo in seguito).
Tra i pochi acidi grassi che possono sopravvivere a questi passaggi, quelli insaturi con più legami doppi, come l’acido linoleico e l’acido linolenico, sono fortemente soggetti a ossidazione: per questo, nella birra finita dovrebbero essere presenti in quantità quasi nulle. Dalla loro ossidazione si formano carbonili responsabili di difetti come il cartone bagnato, il metallico e l’aroma vegetale “verde” che può ricordare l’erba tagliata o anche il cetriolo.
Non tutti i cereali apportano gli stessi grassi
Il contenuto lipidico dei cereali varia a seconda del tipo di cereale utilizzato. Nella tabella sotto ho rappresentato i valori medi degli acidi grassi, in percentuale rispetto al peso totale del chicco, delle varie tipologie di cereali (qui la fonte).
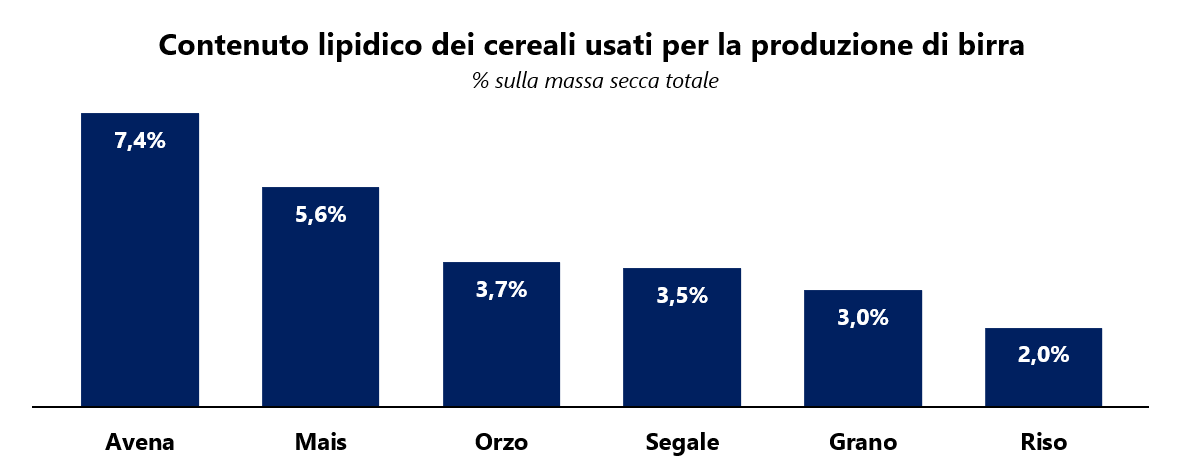
Il mais e l’avena sono i cereali che contengono più grassi, l’orzo è nel mezzo, il riso è il cereale che ne ha mediamente di meno.
Tuttavia, il contenuto in sé dice poco. L’impatto di questi acidi grassi sulla birra dipende molto dalla morfologia del chicco.
Gli acidi grassi sono distribuiti nelle diverse parti del chicco, ma la loro concentrazione varia molto tra i cereali. Nell’orzo, una parte significativa dei lipidi è concentrata nell’embrione e nello strato aleuronico (la parte esterna dell’endosperma, subito prima della glumella vera e propria), ma una quota importante è presente anche nell’endosperma.
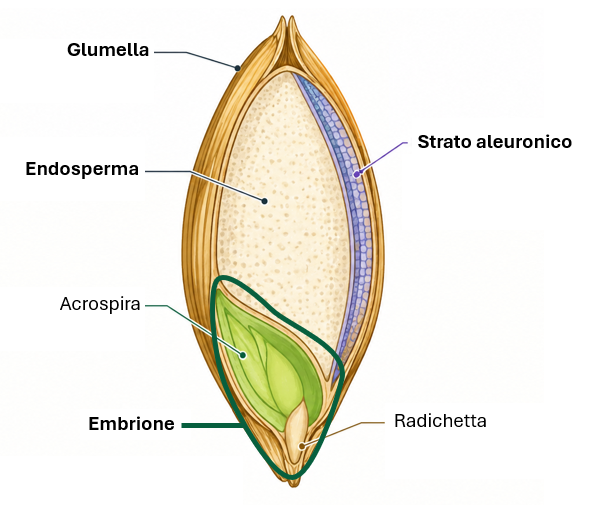
Nel mais, ad esempio, l’embrione è facilmente separabile dal resto del cereale. I fiocchi di mais che si usano nella produzione della birra (ma anche quelli che mangiamo come cereali, o la farina di mais macinata) sono privi del germe (ovvero dell’embrione, sono due termini che indicano la stessa cosa) e quindi con contenuto molto ridotto di acidi grassi. Il mais usato per il popcorn, ad esempio, contiene ancora il germe e quindi anche i grassi.
Diverso invece il discorso per l’avena che, oltre ad avere un contenuto lipidico molto più elevato rispetto all’orzo e agli altri cereali comunemente impiegati nella produzione della birra, presenta gran parte dei lipidi proprio nell’endosperma, cioè nella parte più grande del chicco che contiene anche gli amidi. Quindi, mediamente, l’avena introduce una quantità maggiore di grassi nella birra che possono creare problemi come scarsa tenuta di schiuma o anche difetti da ossidazione.
Quando gli acidi grassi si ossidano
Gli acidi grassi che derivano dai malti non hanno, di per sé, un impatto aromatico significativo: sono composti a bassa volatilità e non percepibili a livello organolettico fino a concentrazioni molto elevate, non caratteristiche della birra.
Purtroppo gli acidi grassi insaturi tendono a ossidarsi. A causa dei doppi legami tra gli atomi di carbonio, la molecola è meno stabile di quella dei saturi e si ossida con facilità. Più doppi legami ci sono, maggiore è la propensione all’ossidazione: i polinsaturi (con due o tre doppi legami) come il linoleico e il linolenico si ossidano più facilmente dei monoinsaturi come l’acido oleico (con un solo doppio legame).
I principali composti che si formano dall’ossidazione degli acidi grassi rientrano nella categoria dei carbonili, nella forma di chetoni ma soprattutto aldeidi, molecole che hanno un’alta volatilità e soglie di percezione molto basse.
Il processo ossidativo che porta alla formazione dei carbonili aromatici dagli acidi grassi è piuttosto insidioso, per diverse ragioni.
L’ossidazione, ovvero la rimozione di un atomo di idrogeno dalla molecola dell’acido grasso insaturo, rappresenta solo il primo passaggio. Il risultato di questa ossidazione è la formazione di un idroperossido lipidico, una molecola che non si manifesta con effetti immediati nel mosto o nella birra: una molecola che non ha un impatto aromatico immediato nel mosto o nella birra: non è volatile e non evolve necessariamente subito verso i prodotti finali del processo ossidativo Rimane nel mosto e poi nella birra, pronta a continuare il percorso che la porterà infine alla formazione del carbonile aroma-attivo che genera il difetto ossidativo.
L’aspetto interessante è che l’idroperossido non deve ossidarsi per produrre il carbonile. Anzi, il processo chimico passa per una riduzione, che è esattamente il contrario di una ossidazione: la molecola acquisisce un elettrone, non lo perde, in questo secondo passaggio (nel primo, quando si è formato l’idroperossido, lo aveva perso).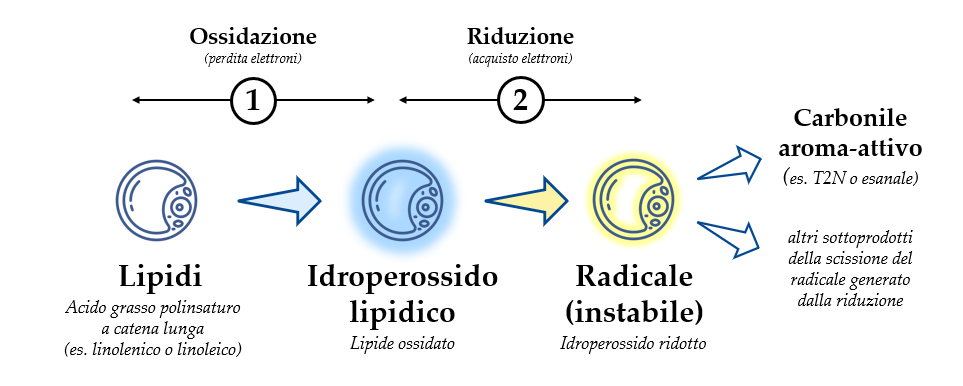 Questo è un passaggio importante, perché implica che la produzione del carbonile si completa anche in assenza di elementi ossidanti nella birra, come ad esempio l’ossigeno.
Come mostrato nell’immagine sopra, il percorso di ossidazione degli acidi grassi si articola quindi in due macro passaggi, seguiti da un terzo che avviene spontaneamente, senza l’intervento di altre molecole.
- Il primo passaggio (1) è ossidativo e porta alla formazione dell’idroperossido, un composto privo di un impatto aromatico rilevante. L’ossidazione può essere causata da radicali liberi derivanti dall’ossigeno o da altri composti già ossidati, presenti nel malto, nel mosto o nella birra.
- Il secondo passaggio (2) è una riduzione: l’idroperossido acquista un elettrone e si trasforma in un radicale instabile. Questo passaggio richiede un donatore di elettroni, in genere metalli come ferro o rame, mentre non servono né ossigeno né altri composti ossidanti.
Dal radicale si liberano poi, per scissione spontanea, i carbonili, cioè le molecole aroma-attive come il trans-2-nonenale (T2N), l’esanale e altre aldeidi che danno note di stale (vecchio) o aroma metallico. Il carbonile che si forma dipende da dove l’ossigeno si lega lungo la catena di atomi di carbonio dell’acido grasso: dallo stesso acido grasso possono quindi derivare aromi diversi, come il cartone bagnato o il metallico (qui un interessante articolo di approfondimento).
Per gli acidi grassi insaturi, l’ossidazione avviene molto spesso già durante la produzione del mosto. In questa fase a caldo, specialmente se l’ammostamento parte sotto i 60°C (ad esempio con un protein rest), entrano in gioco anche gli enzimi lipossigenasi (LOX), che catalizzano direttamente l’ossidazione degli acidi grassi insaturi accelerando la formazione degli idroperossidi.
Anche in assenza degli enzimi LOX, queste ossidazioni avvengono piuttosto frequentemente durante l’ammostamento, per l’inevitabile presenza di ossigeno (da qui la raccomandazione di ridurre lo splashing) e per le alte temperature, che accelerano le reazioni chimiche rispetto a quanto avviene dalla fermentazione in poi.
Per ridurre al minimo la comparsa dei carbonili nel corso dell’invecchiamento della birra non è quindi sufficiente evitare l’introduzione di ossigeno durante travasi e imbottigliamento, ma è importante ridurre l’ossidazione durante la produzione del mosto. E anche, soprattutto, ridurre a monte gli acidi grassi presenti nel mosto: evitare quindi di macinare troppo finemente; eseguire una buona filtrazione del mosto; lasciare più trub possibile sul fondo della pentola di bollitura.
Alcuni carbonili, soprattutto alcune aldeidi come il T2N, possono inoltre reagire o legarsi temporaneamente ad altre molecole, come proteine o amminoacidi, diventando meno volatili. Questi composti possono poi essere nuovamente liberati nel corso dell’invecchiamento.
Tutto è partito anche in questo caso dall’ossidazione degli acidi grassi, ma il prodotto finale, l’aroma ossidato che percepiamo al naso, emerge solo molto tempo dopo, anche se la birra viene conservata in assenza di ossigeno.
La pastorizzazione non interviene sulla catena di reazioni che porta al rilascio dei carbonili volatili, perché questa è di natura chimica e non enzimatica o microbiologica: anche le birre pastorizzate possono quindi soffrire dei difetti da carbonili e dello staling. Il calore accelera queste reazioni, per cui conservare la birra al fresco resta in ogni caso il modo più semplice e pratico per ritardare la comparsa di questi difetti, che la birra sia pastorizzata o no.
Acidi grassi provenienti dal luppolo
Il contenuto lipidico del luppolo è paragonabile a quello del malto: i pochi studi disponibili indicano valori tra il 3 e il 6% del peso secco, sia nei coni sia nei pellet. Prevalgono gli acidi linolenico e linoleico, seguiti di norma dal palmitico (Bamforth e Britton, 2026).
Poiché però il luppolo rappresenta una frazione minima degli ingredienti rispetto al malto, il suo apporto complessivo di acidi grassi è limitato: i suoi lipidi contribuiscono per circa il 3% su quelli totali nel mosto. Come per i lipidi ceduti dal malto, la maggior parte viene poi trattenuta dal trub e rimossa.
Con il dry hopping, soprattutto se in quantità elevate, gli acidi grassi ceduti alla birra possono avere qualche effetto. Sempre secondo l’articolo di Bamforth e Britton citato prima, non esistono ancora studi completi che quantifichino quanti lipidi del luppolo entrino nella birra con le aggiunte a freddo, né i loro effetti a lungo termine su stabilità e qualità.
Prove sperimentali sul dry hopping (Maye, 2017, citato anche da Scott Janish) hanno mostrato che la stabilità della schiuma cala all’aumentare del dosaggio e del tempo di contatto, con differenze tra varietà che sembrano seguire il loro contenuto di acidi grassi. È un aspetto rilevante per le NEIPA, dove le aggiunte a freddo sono molto abbondanti.
Acidi grassi prodotti dal lievito
Vediamo il metabolismo degli acidi grassi nel dettaglio, distinguendo tra saturi e insaturi.
Acidi grassi saturi
Il lievito incamera e produce acidi grassi principalmente per regolare il funzionamento delle membrane cellulari. Le membrane hanno bisogno di acidi grassi a catena lunga (soprattutto 16 e 18 atomi di carbonio), sia saturi che insaturi.
In condizioni anaerobiche, ovvero in assenza di ossigeno molecolare, il lievito sintetizza solo acidi grassi saturi, partendo dall’acetil-CoA (acido acetico attivato che contiene due atomi di carbonio) a cui aggiunge due atomi di carbonio alla volta.
Man mano che la catena carboniosa dell’acido si allunga, si passa per lunghezze intermedie corrispondenti all’acido butirrico (C4:0), caproico (C6:0), caprilico (C8:0) e così via, fino ai 16 atomi di carbonio del palmitico (C16:0) e ai 18 dello stearico (C18:0). Questi ultimi due acidi grassi rappresentano l’obiettivo primario di tutto il processo, ovvero gli acidi grassi saturi che il lievito porta nelle membrane cellulari per regolarne il funzionamento.
Non sempre però la sintesi arriva fino in fondo: una parte degli acidi grassi a catena intermedia può essere rilasciata in anticipo, prima di raggiungere la lunghezza giusta.
Il lievito trasforma parte di questi acidi in esteri fruttati, grazie a enzimi specifici. Gli esteri diffondono fuori dalla cellula e, essendo volatili, arrivano fino al nostro naso. Questa conversione è stata proposta come meccanismo di detossificazione, dato che gli acidi grassi a catena media sono potenzialmente tossici per le cellule (link); resta però un’ipotesi non sostenuta da tutte le fonti che ho trovato. Per gli esteri è stata avanzata anche l’ipotesi di una selezione evolutiva legata alla diffusione del lievito: attirando gli insetti, che trasportano le cellule da un ambiente all’altro, ne favorirebbero la dispersione.
In alcuni casi, gli acidi grassi a catena media possono rimanere nella birra e contribuire ad aromi indesiderati, come note di formaggio, rancido o caprino. La loro presenza può essere legata sia al metabolismo del lievito sia, in caso di contaminazione, a quello di altri microrganismi. A differenza dei polinsaturi del malto, questi acidi saturi difficilmente si ossidano, ma sono già aromatici di per sé.
La via metabolica descritta, che parte dall’acetil-CoA e aggiunge unità di due atomi di carbonio, produce solo acidi grassi a catena pari. Come già specificato nella prima parte di questo articolo, gli acidi a catena dispari e ramificata, come l’acido isovalerico, hanno un’altra origine: possono derivare dal catabolismo degli amminoacidi (la leucina, nel caso dell’isovalerico) durante la fermentazione. In questo caso, però, l’acido è un sottoprodotto del metabolismo e non un intermedio nella produzione di composti necessari al lievito.
Acidi grassi insaturi
Gli acidi grassi insaturi vengono prodotti dal lievito seguendo lo stesso percorso metabolico dei saturi citato prima. Il lievito costruisce prima la catena di carboni a singolo legame (acidi grassi saturi); poi un enzima, la desaturasi, introduce un doppio legame tra due atomi di carbonio (il doppio legame rende gli acidi grassi insaturi). Questo passaggio richiede ossigeno molecolare. I principali acidi grassi insaturi prodotti con questo meccanismo sono il palmitoleico (C16:1) e l’oleico (C18:1).
Gli acidi grassi insaturi a catena lunga vengono in parte incorporati nelle membrane cellulari, per regolarne la fluidità, insieme agli steroli.
Gli steroli sono essenziali per il funzionamento cellulare: nelle membrane, insieme agli acidi grassi insaturi, regolano fluidità e permeabilità. Quando ne hanno più del necessario, le cellule accumulano steroli e acidi grassi legandoli tra loro con una reazione di esterificazione: si formano così gli esteri degli steroli, molecole in cui un acido grasso è legato a uno sterolo. Altre riserve dello stesso tipo sono i trigliceridi, in cui tre acidi grassi sono legati a una molecola di glicerolo. Sterolo e glicerolo sono due alcoli.
In assenza di ossigeno il lievito non può sintetizzare né gli acidi grassi insaturi né gli steroli. Può assimilare una parte degli insaturi presenti nel mosto (provenienti soprattutto dal malto), mentre per gli steroli dipende dalle riserve accumulate in precedenza. Questa è la ragione principale per cui si ossigena il mosto prima dell’inoculo del lievito.
Gli esteri degli steroli e i trigliceridi sono riserve a cui il lievito può attingere quando l’ossigeno nel mosto finisce e non è più possibile sintetizzare acidi grassi insaturi o steroli, indispensabili per garantire la fluidità delle membrane delle cellule generate durante la fermentazione.
I lieviti secchi in genere non richiedono ossigeno nella prima fermentazione, perché vengono prodotti in condizioni aerobiche controllate (cioè con ossigeno in abbondanza), che ne arricchiscono le riserve di steroli e acidi grassi insaturi, immagazzinate in parte come esteri degli steroli e trigliceridi. La successiva disidratazione conserva queste riserve, che permettono alle cellule di costruire nuove membrane durante la fermentazione senza dover sintetizzare quei composti, un processo che altrimenti richiederebbe ossigeno.